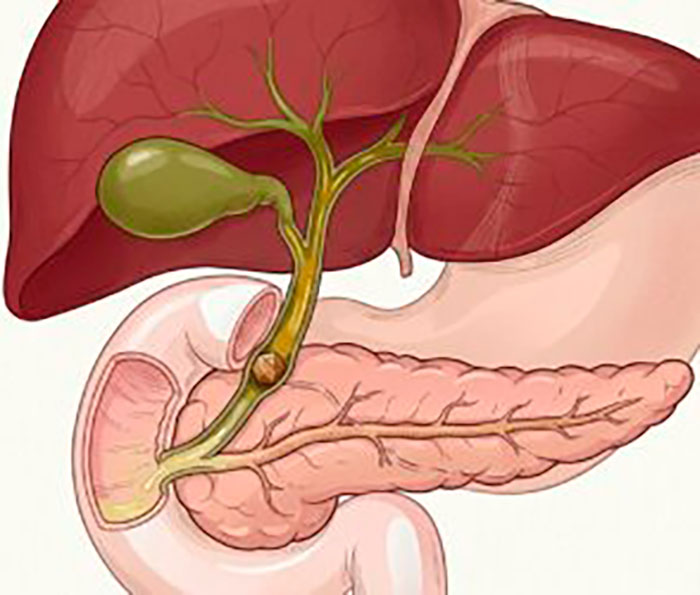
El metabolismo de los subproductos del grupo hemo, como la bilirrubina, por parte de la microbiota intestinal, es esencial para la salud humana, ya que el exceso de bilirrubina puede causar ictericia e incluso daño neurológico. Las enzimas bacterianas que reducen la bilirrubina a urobilinógeno, un paso clave en esta vía metabólica, permanecían sin identificar hasta hace muy poco. En este artículo científico, sus autores han identificado a BilR como una enzima bilirrubina reductasa derivada de la microbiota intestinal, mediante análisis bioquímicos y genómicos.
Presentación
“BilR is a gut microbial enzyme that reduces bilirubin to urobilinogen” (“BilR es una enzima microbiana intestinal que reduce la bilirrubina a urobilinógeno”) es un artículo científico elaborado por Hall, B.; Levy, S.; Dufault-Thompson, K.; Arp, G.; Zhong, A.; Mniabou Ndjite, G.; Weiss, A.; Braccia, D.; Jenkins, C.; Grant, M.; Abeysinghe, S.; Yang, Y.; Jermain, M.; Wu, C.; Ma, B. y Jiang, X., y publicado en el Volumen 9 de la revista científica Nature Microbiology en enero de 2024, en el que sus autores cuentan cómo mediante análisis bioquímicos y genómica comparativa lograron identificar a BilR como una bilirrubina reductasa derivada de la microbiota intestinal que reduce la bilirrubina a urobilinógeno, lo cual arroja luz sobre el papel del microbioma intestinal en el metabolismo de la bilirrubina y subraya la importancia del eje intestino-hígado para mantener la homeostasis de la bilirrubina.
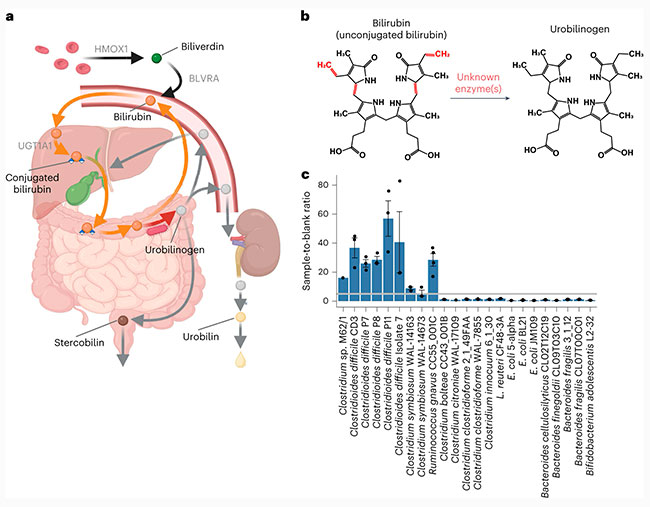
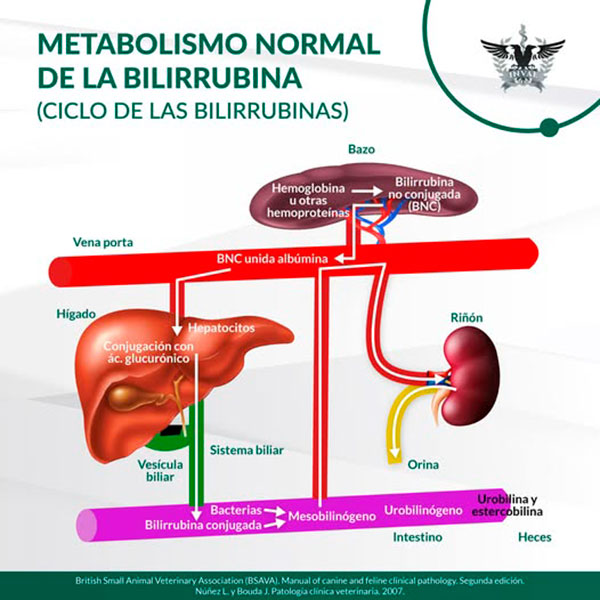
La bilirrubina, un intermediario de la vía de degradación del hemo, desempeña un papel fundamental en la fisiología humana a través del eje intestino-hígado. Junto con otras moléculas orgánicas presentes en la bilis, como el colesterol y los ácidos biliares, el diglucurónido de bilirrubina (bilirrubina conjugada) se secreta en el intestino, donde se excreta o se reabsorbe.
Cuando el diglucurónido de bilirrubina se desconjuga mediante beta-glucuronidasas humanas o bacterianas en bilirrubina no conjugada, puede reabsorberse fácilmente en la circulación enterohepática o metabolizarse posteriormente mediante reacciones de reducción por microorganismos intestinales en los metabolitos más excretables urobilinógeno y estercobilinógeno.
La reabsorción de bilirrubina eleva los niveles séricos de bilirrubina, mientras que su excreción como urobilinógeno y estercobilinógeno en las heces y la orina, facilita su eliminación, completando así la vía de degradación del hemo; lo cual se muestra en el esquema 1a de la siguiente Figura, junto a un diagrama de las estructuras de bilirrubina y urobilinógeno mostrando su reducción (1b), y un gráfico con el resultado de una prueba de fluorescencia de cepas bacterianas (1c).
La desregulación de la reducción de bilirrubina por la microbiota intestinal afecta los niveles séricos de bilirrubina, lo que puede tener importantes implicaciones para la salud. En concentraciones moderadas, la bilirrubina actúa como un importante antioxidante con potenciales beneficios. Sin embargo, las concentraciones elevadas de bilirrubina sérica pueden volverse tóxicas, provocando ictericia y, en casos extremos, kernícterus, un tipo de daño neurológico inducido por la bilirrubina. De manera similar, el urobilinógeno puede reabsorberse y se ha asociado con múltiples enfermedades, lo que subraya el papel clave de la reducción de bilirrubina en la homeostasis de múltiples metabolitos.
Si bien la importancia de la circulación enterohepática de la bilirrubina para los niveles séricos de bilirrubina se sugirió en las décadas de 1960 y 1970, se subestimó en gran medida hasta que estudios a principios de la década de 2000 demostraron el impacto directo del metabolismo microbiano de la bilirrubina en los niveles séricos de bilirrubina en ratas. Desde entonces, a pesar del reconocido papel de los microorganismos intestinales en la reducción de la bilirrubina, la enzima microbiana intestinal que la reduce a urobilinógeno, denominada bilirrubina reductasa, aún no se había descubierto. Sin conocer el gen que codifica la bilirrubina reductasa, es difícil extraer conclusiones sobre cómo el metabolismo microbiano intestinal afecta la homeostasis de la bilirrubina sérica, lo que deja una importante laguna en nuestra comprensión de la vía de degradación del hemo.
En este trabajo, se logró identificar a BilR, la enzima responsable de la reducción de bilirrubina a urobilinógeno, y aplicar este conocimiento para comprender la relación entre la reducción microbiana de bilirrubina y la salud humana.
Así, este estudio llena una laguna de conocimiento de larga data en la vía de degradación del hemo y proporciona un elemento fundamental para comprender los trastornos de la homeostasis de la bilirrubina sérica, como la ictericia.
Métodos de trabajo
A continuación, se describen los métodos de trabajo llevados a cabo por los científicos para lograr la identificación de la enzima BilR.
Métodos de cultivo
Para obtener las cepas bacterianas necesarias, los científicos realizaron estos dos procesos:
- Bacterias anaeróbicas: Las cepas bacterianas se obtuvieron del Repositorio de Recursos de Investigación en Biodefensa e Infecciones Emergentes (BEI) de los NIH. Se inocularon a partir de una reserva de glicerol y se cultivaron en condiciones anaeróbicas a 37°C en una cámara anaeróbica. Posteriormente, se cultivaron en 200ml de caldo líquido de infusión cerebro-corazón (BHI) o en caldo de levadura-castona-ácido graso con 4,4mg por 100ml de bilirrubina estéril filtrada disuelta en dimetilsulfóxido. Las bacterias se cultivaron anaeróbicamente a 37°C durante 24h.
- E. coli transformada: Las cepas de E. coli transformada se inocularon a partir de una placa de agar en 300ml de medio BHI con 100μg/ml de carbenicilina o 50μg/ml de kanamicina y 100μM de isopropil β-D-1-tiogalactopiranósido, y se incubaron en condiciones aeróbicas a 37°C durante 16 horas. Posteriormente, las bacterias se centrifugaron a 3260 × g durante 6 minutos y se transfirieron a la cámara anaeróbica. El precipitado se resuspendió en 200ml de BHI con 4,4mg por 100ml de bilirrubina estéril filtrada disuelta en DMSO, 100μg ml−1 de carbenicilina o 50μg ml−1 de kanamicina y 100μM de IPTG, para inducir la expresión del gen o genes BilR clonados. Las cepas se incubaron en condiciones anaeróbicas a 37°C durante 24h.
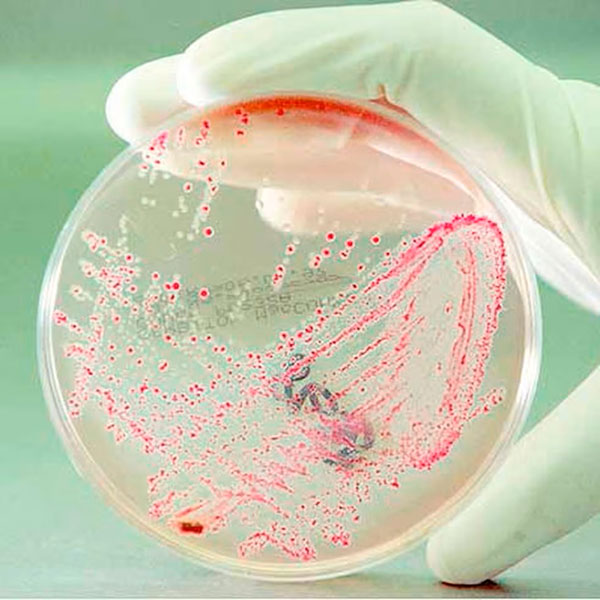
Medición de la reducción de bilirrubina
Para medir la reducción de bilirrubina a urobilinógeno llevaron a cabo estos dos métodos:
Ensayo de fluorescencia
Los cultivos bacterianos se extrajeron de la cámara anaeróbica y se centrifugaron a 3260 × g durante 6 minutos. El sobrenadante se filtró a través de un filtro no estéril de 0,22μm. Se añadieron 5ml de cloroformo y se separó mediante extracción orgánica en un embudo de separación. La solución resultante de cloroformo-urobilinógeno se secó al aire hasta la evaporación completa del cloroformo, obteniéndose así el extracto utilizado en los ensayos de fluorescencia y en los análisis LC-MS/MS posteriores.
Dado que el urobilinógeno, producto de la reducción de bilirrubina, es inestable en presencia de oxígeno, no fue posible medir el urobilinógeno directamente. Por lo tanto, para medir la reducción de bilirrubina, el urobilinógeno se oxidó a urobilina mediante la adición de yodo. Entonces, la urobilina se cuantificó añadiendo una solución de acetato de zinc (reactivo de Schlesinger) para formar un complejo fluorescente de zinc-urobilina. Sin embargo, este ensayo también detecta estercobilina, que fluoresce a la misma longitud de onda que la urobilina. Para diferenciar ambos productos potenciales, el ensayo de fluorescencia se verificó mediante espectrometría de masas.
La solución resultante se dividió en triplicados o cuádruples de 100µl en una placa acrílica de 96 pocillos. La fluorescencia de cada pocillo se midió con un lector de placas SpectraMax M5 utilizando una longitud de onda de excitación de 495nm y una longitud de onda de emisión de 525nm con ganancia media.
Las muestras que produjeron una señal de fluorescencia superior a cinco veces la fluorescencia de un control de medio abiótico se identificaron como reductoras, mientras que las muestras con una señal inferior a cinco veces este umbral se consideraron no reductoras.
LC-MS/MS
Se tomó una alícuota de 1ml de la solución obtenida de la extracción y se envió por mensajería urgente en hielo seco al laboratorio central de metabolómica de Duke.
A las muestras secas se les añadieron 60µl de solución de povidona yodada al 10%, se agitaron en un vórtex y se centrifugaron a 15 000 × g durante 5 minutos a 4°C. El sobrenadante se transfirió a un vial de vidrio Macherey-Nagel de 1,7ml para la inyección en el sistema LC-MS/MS.
Las muestras se analizaron con el sistema 6500+ QTRAP LC-MS/MS (Sciex). El volumen de inyección fue de 5μl. La separación por cromatografía líquida se realizó en una columna Agilent Eclipse Plus C18 RRHD con fase móvil A (ácido fórmico al 0,2% en agua) y fase móvil B (ácido fórmico al 0,2% en acetonitrilo). El automuestreador se ajustó a 10°C y la columna se mantuvo a 35°C.
Los espectros de masas se adquirieron mediante ionización por electrospray positiva con un voltaje de ionización de 5500 V. La temperatura de la fuente fue de 450°C. Se utilizó monitorización de reacciones múltiples para detectar mesobilirrubina, urobilina y estercobilina. Se realizó una coinyección de Clostridium symbiosum incubado con bilirrubina y el estándar de urobilinógeno para asegurar que los tiempos de retención observados en las muestras y los estándares fueran consistentes. Finalmente, todos los datos se analizaron con el software Analyst 1.7.1.
Desarrollo de constructos
- pCW–sym–bilRS: Para expresar los genes BilRS de Clostridium symbiosum en coli, el gen se amplificó y se insertó en el vector de expresión pCW–lic. Para ello, se realizó una amplificación por reacción en cadena de la polimerasa (PCR) utilizando OneTaq Master Mix sobre ADN genómico de Clostridium symbiosum. El producto se purificó con un kit de purificación de ADN y PCR Monarch y se digirió con las enzimas Nde1 y Kpn1-HF para su posterior ligación al vector, el cual se digirió con las mismas enzimas. Posteriormente, pCW–lic se desfosforiló con fosfatasa antártica para evitar la autoligación. Por último, el inserto digerido y el vector desfosforilado se ligaron con la ADN ligasa T4 para formar el constructo.
- pCW–dif–bilRS: Se utilizó el mismo protocolo que para pCW–sym–bilRS, con dos excepciones: se realizó la amplificación por PCR del ADN genómico de Clostridioides difficile, y su producto se digirió con las enzimas BamH1-HF y HindIII-HF antes de la ligación.
- pCW–gna–bilR: En este caso, se utilizó el mismo protocolo, pero llevando a cabo la amplificación por PCR del ADN genómico de Ruminococcus gnavus.
Las células se sembraron en placas de Luria-Bertani (LB) con 100μg ml⁻¹ de carbenicilina para seleccionar las colonias transformadas con éxito. Las colonias transformadas se verificaron mediante secuenciación Sanger por Azenta.
Transformación de constructos pCW
Los constructos se transformaron individualmente en células competentes de E. coli NEB 10β como se indica en los siguientes pasos.
- pET28–bilR: En primer lugar, con el fin de optimizar la expresión de BilR, se desarrolló un segundo constructo utilizando el vector pET28a(+). Para clonar el gen BilR de Ruminococcus gnavus CC55_001C en pET28a(+) para la expresión de la proteína, el inserto se amplificó a partir de una cepa de Ruminococcus gnavus conservada en glicerol. Los productos de PCR resultantes del inserto y del esqueleto del vector se ensamblaron utilizando la mezcla maestra de ensamblaje de ADN NEBuilder HiFi para obtener pET28–BilR.
- pET28–bilR–166AA: A continuación, la mutagénesis dirigida se realizó siguiendo los protocolos del kit Agilent QuikChange II, con la excepción de que se emplearon la ADN polimerasa KOD Hot Start y coli competente NEB Turbo. Así, el producto de PCR se amplificó con pET28–BilR como molde, para obtener pET28–BilR–D166A + R167A. Las mutaciones se confirmaron mediante secuenciación Sanger.
- Transformación del constructo pET: El constructo anterior se transformó en células competentes de coli T7 que expresan lysY/Iq. Las células se sembraron en placas de agar LB con 50μg ml⁻¹ de kanamicina para seleccionar las colonias transformadas con éxito. Las colonias transformadas se verificaron mediante secuenciación Sanger con Azenta, y los plásmidos se verificaron con Plasmidsaurus.
Purificación y dicroísmo circular
Para la purificación de proteínas, la cepa de E. coli T7 que expresa lysY/Iq, transformada con pET28–bilR(DR166AA) o pET28–bilR, se cultivó durante la noche en caldo LB con 50μg ml⁻¹ de kanamicina. El inóculo (5 ml) se transfirió a dichos cultivos y se cultivó hasta alcanzar una densidad óptica de aproximadamente 0,5.
La expresión de las proteínas se indujo con 0,4mM de isopropil β-D-1-tiogalactopiranósido, y los cultivos se incubaron a 25°C durante 18h. Las células se centrifugaron a 3000 × g y se congelaron durante 2h antes de resuspenderlas en tampón de lisis. A continuación, las muestras se sonicaron y se centrifugaron a 21 130 × g.
Se utilizó electroforesis en gel de poliacrilamida con dodecilsulfato de sodio para verificar la presencia de la proteína en el sobrenadante del lisado. Posteriormente, el sobrenadante se filtró con un filtro estéril de 0,2μm y se purificó mediante una columna de níquel y una columna de filtración por gravedad de 5ml. Las proteínas purificadas se eluyeron utilizando un tampón de elución esterilizado por filtración.
Se tomaron mediciones de dicroísmo circular (una técnica espectroscópica que mide la diferencia en la absorción de luz polarizada circularmente a la izquierda y a la derecha) para la proteína BilR de tipo salvaje purificada y la proteína BilR mutante (DR166AA), en un tampón Tris de 20mM con 50mM de cloruro de sodio a un pH de 7. Las mediciones de dicroísmo circular se realizaron utilizando el espectropolarímetro Jasco J-810 con una longitud de paso de 1mm, y luego las mediciones se normalizaron y visualizaron utilizando R.
Análisis bioinformático
Para el análisis bioinformático, llevaron a cabo lo siguiente:
Identificación de genes candidatos BilR
Descargaron del NCBI cinco genomas de bacterias reductoras de bilirrubina confirmadas experimentalmente y cinco genomas de bacterias no reductoras confirmadas estrechamente relacionadas. Los genomas se ensamblaron utilizando Spades y se anotaron con Prokka. Se utilizó Orthologer para agrupar las secuencias de proteínas predichas de cada genoma en ortogrupos. Luego se utilizó ECPred para asignar los números EC putativos a cada secuencia de proteína.
Más tarde, subconjuntaron los ortogrupos para conservar los grupos que contenían solo más de 2 proteínas asignadas al número EC de oxidorreductasa (EC: 1.-.-.-), dejando un total de 389 ortogrupos.
Perfilaron la distribución taxonómica de las proteínas dentro de estos ortogrupos de oxidorreductasa para identificar los ortogrupos que estaban presentes en las bacterias reductoras de bilirrubina y ausentes en las especies no reductoras. Solo dos ortogrupos se ajustaban a la distribución taxonómica. De estos, uno se asignó a EC: 1.17.7.4 (4-hidroxi-3-metilbut-2-enil difosfato reductasa) y es poco probable que sea bilirrubina reductasa; el otro fue asignado a EC: 1.-.-.- y fue investigado más a fondo como una supuesta bilirrubina reductasa.
Predicción estructural y acoplamiento molecular
Las estructuras de la supuesta proteína BilR de Ruminococcus gnavus CC55_001C y de las proteínas BilR y BilS de Clostridium symbiosum WAL-14163 se predijeron utilizando AlphaFold.
Los posibles sitios de unión al sustrato se predijeron utilizando Fpocket. Los sitios predichos se visualizaron utilizando PyMOL y se compararon con la región de unión al sustrato de la 2,4-dienoil-CoA reductasa homóloga de E. coli (PDB: 1PS9) para identificar tres posibles regiones de unión al sustrato en la estructura de BilR.
Las estructuras de la bilirrubina y el flavín mononucleótido (FMN) se acoplaron a la estructura BilR de Ruminococcus gnavus utilizando AutoDock Vina. Se realizaron simulaciones de acoplamiento con Fpocket y los resultados del acoplamiento se visualizaron utilizando PyMOL.
Se realizaron alineaciones estructurales de proteínas entre la estructura predicha de Ruminococcus gnavus CC55_001C y cada una de las estructuras de Clostridium symbiosum WAL-14163 BilR, Clostridium symbiosum WAL-14163 BilS y E. coli 1PS9, utilizando TM-Align50. La conservación de la secuencia de proteínas se visualizó en la estructura predicha de Ruminococcus gnavus BilR utilizando ConSurf.
Búsqueda de BilR en la GTDB
Se extrajo la alineación de las secuencias de aminoácidos de las especies del clado 1 (Figura 4a de los Resultados) y las posiciones en la alineación correspondientes a los primeros 373 residuos de la proteína BilR de Ruminococcus gnavus CC55_001C, para generar un perfil de modelo oculto de Markov (HMM) utilizando la herramienta hmmbuild.
Posteriormente, se utilizó el perfil HMM para realizar una búsqueda con hmmsearch en los genomas de la GTDB51, con el fin de perfilar la distribución taxonómica de BilR. A continuación, se realizó una predicción del dominio proteico en los supuestos resultados de BilR utilizando InterProScan.
Las secuencias putativas de BilR se filtraron requiriendo que tuvieran al menos el 50% de la longitud de las secuencias de BilR de Clostridium symbiosum WAL-14163, que presentaran el motivo HGDR altamente conservado, y que solo tuvieran los dominios esperados (PF00724 para la versión más corta de BilR o PF07992 y PF00724 para la versión más larga). Posteriormente, se resumió la presencia o ausencia de BilR en los diferentes taxones bacterianos y los resultados se visualizaron con iTOL53.
Análisis de la presencia de BilR en el intestino humano
Se recopiló una colección de conjuntos de datos de metagenoma que superaron el control de calidad básico para obtener una muestra representativa de metagenomas intestinales de lactantes en el primer año de vida (n = 4296), pacientes con EII (n = 1863) y adultos sanos (n = 1801).
Se generó un conjunto de datos del gen de referencia BilR mediante la búsqueda en la colección del Genoma Gastrointestinal Humano Unificado (UGG), utilizando el perfil HMM de BilR generado previamente. Tras una filtración, se obtuvo como resultado un total de 11158 secuencias de referencia de BilR.
Todos los metagenomas se procesaron mediante un flujo de trabajo estándar que constaba de los siguientes pasos:
(1) Se descargaron las lecturas de SRA,
(2) se recortaron los adaptadores con Trim-Galore con la configuración predeterminada,
(3) se identificaron las lecturas potencialmente contaminantes humanas, mapeándolas a una referencia del genoma humano, y se eliminaron con Samtools,
(4) se descartaron las muestras con menos de un millón de lecturas y
(5) se alinearon las lecturas con el conjunto de genes de referencia BilR mediante Bowtie2.
El número de lecturas mapeadas a la base de datos de referencia BilR se resumió para cada muestra normalizándolo por el número total de lecturas de la muestra y multiplicándolo por un millón, para obtener un valor de recuentos por millón (CPM) de BilR.
Los metagenomas relacionados con bebés se agruparon en grupos de edad de 30 días desde 0 días hasta 1 año de vida. Las muestras de pacientes con EII se categorizaron según si el paciente tenía colitis ulcerosa o enfermedad de Crohn. Para los metagenomas de intestino sano, se excluyeron las muestras si eran de pacientes menores de 3 años de edad. Asimismo, se consideró que BilR estaba presente en una muestra si el valor de bilR CPM era mayor que cinco CPM.
Finalmente, la prevalencia de BilR entre grupos se comparó mediante una prueba de proporciones iguales, usando la función ‘prop.test’ de la biblioteca ‘stats’ de R, para probar si la proporción dada de muestras con BilR presente era diferente entre dos grupos.
Resultados del estudio de identificación de la enzima BilR
En los siguientes apartados se indican y muestran los resultados del estudio de identificación de BilR en humanos obtenidos por los científicos.
Identificación de una presunta bilirrubina reductasa
El objetivo fue localizar el gen que codifica la bilirrubina reductasa mediante cribado experimental y genómica comparativa. La enzima bilirrubina reductasa es probablemente una oxidorreductasa que actúa sobre los enlaces dobles carbono-carbono. Además, este gen debería estar presente en los genomas de las especies que pueden reducir la bilirrubina y ausente en las que no pueden.
Al examinar especies estrechamente relacionadas con diferentes capacidades para reducir la bilirrubina, buscaron identificar un gen específico responsable de esta actividad.
Para identificar especies microbianas intestinales presuntamente capaces de reducir la bilirrubina, utilizaron un ensayo de fluorescencia en extractos de bacterias cultivadas en medios con bilirrubina. La premisa del ensayo es que los productos potenciales inestables de la reducción de bilirrubina, urobilinógeno y estercobilinógeno, pueden oxidarse fácilmente a urobilina y estercobilina, más estables, con la adición de yodo, y medirse mediante fluorescencia, mientras que la bilirrubina no unida a proteínas no es fluorescente. Como control positivo, demostraron que la bacteria reductora de bilirrubina conocida, Clostridioides difficile CD3, dio un resultado positivo en el ensayo de fluorescencia y que no se produjo fluorescencia cuando no se añadió bilirrubina al cultivo.
Para buscar otras especies potencialmente reductoras de bilirrubina, cultivaron diversas bacterias de los principales filos del microbioma intestinal humano, priorizando las especies previamente descritas como reductoras de bilirrubina y sus parientes taxonómicos, en medios suplementados con bilirrubina, y analizaron la urobilina mediante fluorescencia.
Mediante este ensayo de fluorescencia, identificaron una posible actividad reductora de bilirrubina en nueve cepas, incluyendo tres especies que previamente se desconocían por su capacidad para reducir la bilirrubina: Clostridium symbiosum (cepas WAL-14163 y WAL-14673), Clostridium sp. M62/1 y Ruminococcus gnavus CC55_001C.
De las especies analizadas, todas las reductoras de bilirrubina pertenecían a la clase Clostridia del filo Firmicutes. Sin embargo, parientes cercanos de estas reductoras no mostraron actividad reductora.
Por otro lado, los científicos aprovecharon la variabilidad en la reducción de bilirrubina entre cepas estrechamente relacionadas para identificar genes candidatos de bilirrubina reductasa mediante un análisis de genómica comparativa. El análisis se centró en los genomas de cinco cepas putativas reductoras de bilirrubina y cinco cepas estrechamente relacionadas que no mostraron actividad de reducción de bilirrubina en el ensayo de fluorescencia.
Entre los diez genomas analizados, identificaron un total de 6256 ortogrupos, de los cuales se predijo que 389 eran oxidorreductasas putativas. Solo dos de estos ortogrupos se ajustaban al mismo patrón de presencia y ausencia en las cepas que el fenotipo de reducción de bilirrubina. Se predijo que uno de ellos era una 4-hidroxi-3-metilbut-2-enil difosfato reductasa (EC: 1.17.1.2), que es una enzima que actúa sobre grupos CH o CH2 y está involucrada en la biosíntesis de isoprenoides, pero no cumplió con los requisitos propuestos para una enzima bilirrubina reductasa. El otro ortogrupo de reductasa fue una enzima no anotada que resultó ser homóloga a la 2,4-dienoil-CoA reductasa (EC: 1.3.1.34), una oxidorreductasa que reduce los enlaces dobles carbono-carbono, similar a la reacción de reducción de bilirrubina esperada.
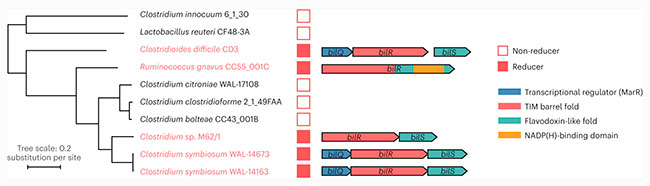
Luego, analizaron los operones que contenían las presuntas bilirrubina reductasas. Identificaron tres versiones de un presunto operón de bilirrubina reductasa, que consistían en diferentes combinaciones de tres genes, denominados en adelante BilQ, BilR y BilS, como puede verse en la siguiente Figura 2. BilR es la presunta bilirrubina reductasa, BilS es una proteína similar a la flavodoxina, y BilQ es un regulador transcripcional de la familia MarR.
Las dos cepas de Clostridium symbiosum contenían versiones del operón que incluían los tres genes. Clostridium sp. M62/1 tenía solo BilR y BilS, y Ruminococcus gnavus CC55_001C tenía solo BilR, el cual difiere en que codifica dos dominios C-terminales adicionales, en comparación con los otros cuatro genes BilR. Se predice que el dominio N-terminal de la proteína BilR de Ruminococcus gnavus CC55_001C es un pliegue de barril de triosa-fosfato isomerasa (TIM), y es homólogo a las secuencias proteicas completas de otros genes BilR. Los dos dominios adicionales del BilR de Ruminococcus gnavus CC55_001C son un dominio similar a la flavodoxina y un dominio de unión a NADP(H). No se detectó homología de secuencia entre el dominio similar a la flavodoxina codificado por BilR de Ruminococcus gnavus CC55_001C y la proteína similar a la flavodoxina codificada por BilS, aunque se predice que tienen el mismo plegamiento y probablemente participan en la transferencia de electrones.
Se predijo que BilR de Ruminococcus gnavus CC55_001C pertenece a la familia Old Yellow Enzy COG1902 y presenta una clara homología con la 2,4-dienoil-CoA reductasa de Escherichia coli, una enzima que cataliza la reducción de los tioésteres 2-trans,4-cis y 2-trans,4-trans-dienoil-CoA. Esta homología respalda la identificación de BilR como una posible bilirrubina reductasa, ya que se postula que esta es una oxidorreductasa que puede actuar sobre los múltiples grupos CH–CH de la bilirrubina.
La siguiente Figura muestra los posibles operones de la bilirrubina reductasa. El árbol filogenético muestra la relación entre cinco enzimas reductoras de bilirrubina y cinco enzimas no reductoras. Los genes se representan con flechas. Los genes están coloreados para mostrar los dominios predichos.
BilR confiere actividad de bilirrubina reductasa
Una vez identificada BilR como una posible bilirrubina reductasa, buscaron validar experimentalmente que es suficiente para conferir actividad de bilirrubina reductasa mediante expresión heteróloga en E. coli.
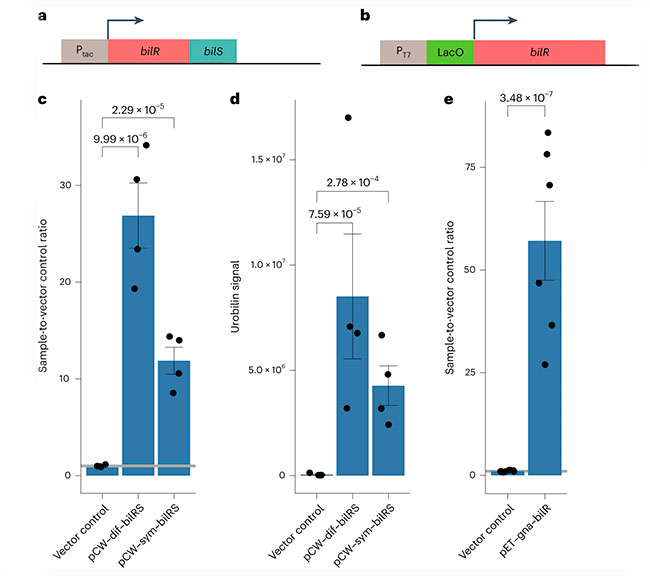
Los genes BilRS de Clostridium symbiosum y Clostridioides difficile (bilRS corto) y de Ruminococcus gnavus (bilR largo) se clonaron por separado en un vector pCW–lic y luego se transformaron en E. coli 10-beta, o en un vector pET-28a(+) y se transformaron en E. coli T7.
Para validar que el ensayo de fluorescencia pudiera utilizarse como un indicador indirecto de la reducción de bilirrubina a urobilinógeno, analizaron la reducción de bilirrubina a urobilinógeno mediante un ensayo de fluorescencia y verificaron los resultados con cromatografía líquida y espectrometría de masas en tándem (LC-MS/MS).
Las cepas transformadas con BilRS de Clostridioides difficile y Clostridium symbiosum mostraron fluorescencia significativa después de ser incubadas con bilirrubina, y se observó la presencia de urobilina en las muestras LC-MS correspondientes. Además, las muestras no presentaron picos que indicaran la presencia de estercobilina, lo que sugiere que el ensayo podría utilizarse como un indicador fiable de la reducción de bilirrubina a urobilinógeno.
El constructo BilR largo de Ruminococcus gnavus también fue capaz de reducir la bilirrubina a urobilinógeno, mientras que E. coli con el esqueleto del vector vacío pCW–lic no redujo la bilirrubina. Sin embargo, los reductores de bilirrubina nativos y E. coli que expresa bilRS también fueron capaces de reducir la mesobilirrubina a urobilinógeno, lo que sugiere que la enzima puede actuar sobre los cuatro dobles enlaces de la bilirrubina.
Estos resultados demuestran que BilR es suficiente para reducir la bilirrubina o la mesobilirrubina a urobilinógeno.
Delimitación del clado BilR
Para delimitar las secuencias de BilR de otros miembros de la familia de la enzima Old Yellow, se utilizó una combinación de predicción estructural y conservación de secuencias para identificar residuos clave en las secuencias putativas de BilR y diferenciarlas de las demás.
El análisis reveló que un clado en particular, denominado clado 1, probablemente corresponde al clado de la bilirrubina reductasa, lo cual se muestra en la siguiente Figura 4.
La estructura predicha de BilR se comparó con la enzima 2,4-dienoil-CoA reductasa de E. coli, estructuralmente homóloga, lo que permitió identificar el posible sitio activo en la enzima BilR.
Se cree que el residuo Y166 en la 2,4-dienoil-CoA reductasa de E. coli protona uno de los átomos de carbono que forman el doble enlace carbono-carbono en el sustrato de la enzima, completando la reducción de dicho enlace. La posición similar del residuo de arginina con carga positiva en la estructura predicha de BilR sugiere que el residuo R167 o el vecino D166 también podrían estar actuando como donadores de protones, completando la reacción de reducción después de una transferencia de hidruro al doble enlace carbono-carbono desde un cofactor de flavina de NAD(P)H.
Se encontró que los residuos D166 y R167, junto con los residuos H164 y G165 vecinos, están conservados entre los genes BilR de las cinco especies reductoras de bilirrubina confirmadas. La búsqueda del motivo Histidina, Glicina, Ácido Aspártico, Arginina (HGDR) dentro de la familia de la Enzima Old Yellow reveló que se conserva casi universalmente dentro de un clado proteico más amplio que incluye las cinco bilirrubinas reductasas (Figuras 4b, c). La conservación de estos residuos en las secuencias del clado 1 (Figura 4a), junto con la similitud de su posición con los residuos del sitio activo en la enzima 2,4-dienoil-CoA reductasa de E. coli, sugiere que el clado 1 contiene las enzimas bilirrubina reductasas.
La siguiente Figura contiene un árbol genético construido a partir de secuencias putativas de bilR y reductasas relacionadas de la familia de la Enzima Old Yellow. Los reductores de bilirrubina confirmados experimentalmente están etiquetados en el árbol. El clado 1 indica el clado bilR general, y el clado 2 indica el clado bilR corto (a); la estructura predicha por AlphaFold de Ruminococcus gnavus BilR con secuencias coloreadas para mostrar su grado de conservación dentro del clado 1 basado en un análisis de conservación ConSurf. Se muestra una molécula de bilirrubina (verde) y FMN (naranja) acopladas en la estructura, y los recuadros muestran el sitio potencial de interacción entre el residuo R167 y los supuestos sustratos de la enzima. Los residuos HGDR están coloreados de púrpura en los recuadros (b); un diagrama que muestra la conservación de posiciones dentro de las secuencias BilR del clado 1, donde las posiciones del motivo HGDR conservado están coloreadas (c); y los resultados del ensayo de fluorescencia que comparan las actividades de la bilirrubina reductasa en E. coli 10-beta transformada con el vector control, Ruminococcus gnavus bilR y Ruminococcus gnavus bilR con los residuos de ácido aspártico, arginina (DR) en la posición 166–167 mutados a alanina, alanina (AA) (d).
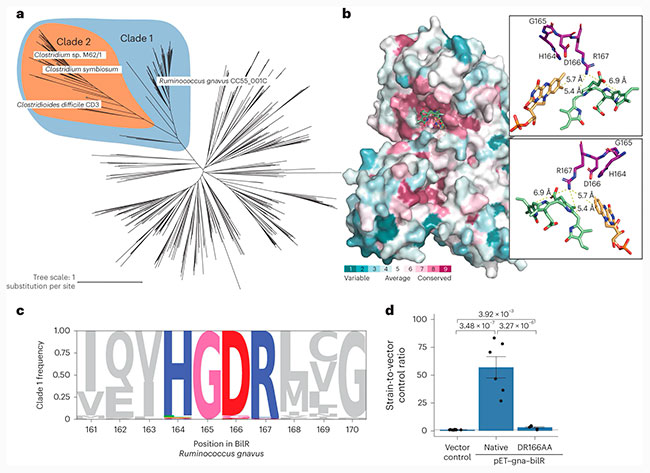
Para confirmar que el clado 1 está compuesto por enzimas bilirrubina reductasa, realizaron experimentos para investigar el impacto funcional de los residuos D166 y R167 en la actividad enzimática. Esto incluyó la mutación de los residuos en cuestión a D166A y R167A y la expresión heteróloga de la proteína mutada para medir el impacto en la actividad enzimática.
La proteína mutada mostró propiedades estructurales similares a las de la proteína de tipo silvestre, lo que confirma que la mutación no produjo una alteración importante en el plegamiento general de la enzima. Cuando se expresó en E. coli, la proteína mutada mostró una actividad de bilirrubina reductasa significativamente menor que la proteína de tipo silvestre. Este enfoque experimental proporciona evidencia directa de que los residuos D166 y R167 en el sitio activo son cruciales para la reducción de bilirrubina, una característica específica de las enzimas bilirrubina reductasa y distinta de la de otros miembros de la familia de la enzima Old Yellow, lo que respalda la asignación del clado 1 como bilirrubina reductasa.
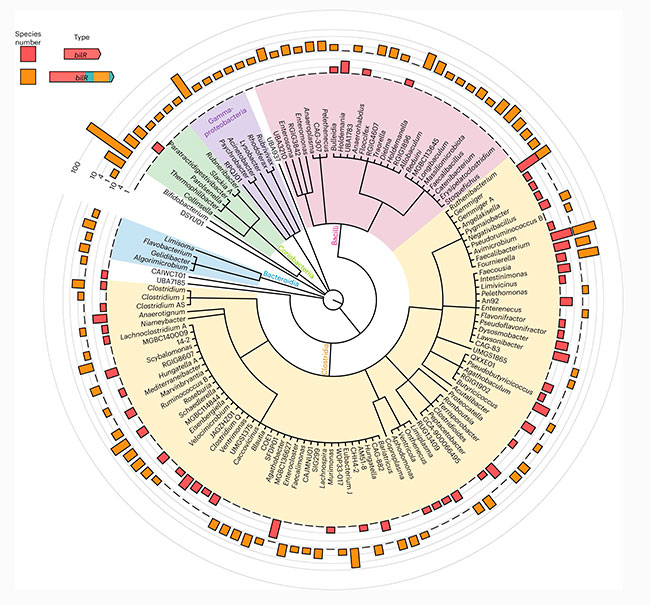
Posteriormente, examinaron la distribución taxonómica y la diversidad de los reductores de bilirrubina, identificando presuntas bilirrubina reductasas en 658 de los genomas representativos de la Base de Datos de Taxonomía Genómica.
La distribución de los genes BilR concuerda en gran medida con las especies reductoras de bilirrubina previamente descritas, como Clostridium ramosum y Clostridioides difficile, que presentan genes BilR predichos. Si bien el genoma representativo de Clostridium perfringens no posee bilirrubina reductasa, 137 de los 315 genomas asignados a esta especie sí la tienen, lo que sugiere que la reducción de bilirrubina es una característica específica de la cepa. Cabe destacar que no se predijo que ninguna especie de la familia Bacteroidaceae fuera reductora de bilirrubina, lo que contradice un informe anterior de 1972; sin embargo, esto podría deberse a que se trata de una característica específica de la cepa o a una asignación taxonómica incorrecta.
La mayoría de los genes BilR se identificaron en especies de Firmicutes, incluyendo especies comunes del intestino humano como Roseburia intestinalis, Roseburia inulinivorans y Faecalibacterium prausnitzii, observándose una mezcla de ambas versiones de BilR.
La variante larga del gen bilR está ampliamente distribuida en múltiples filos, mientras que la variante corta parece ser más exclusiva de Firmicutes, encontrándose solo en el género Parolsenella fuera de Firmicutes.
Además, la variante corta del gen BilR es monofilética (clado 2 en la Figura 4a), lo que sugiere que ha habido una extensa transferencia horizontal de genes durante la evolución de BilR, particularmente en Firmicutes.
Asimismo, algunos genes BilR se encontraron en bacterias de Flavobacteriales, que se localizan típicamente en ambientes acuáticos y terrestres, lo que sugiere un posible papel de la bilirrubina reductasa en la degradación de la bilirrubina o metabolitos similares en otros ambientes.
También se predijo que nueve especies del género Bifidobacterium reducían la bilirrubina y fueron aisladas de las heces de animales no humanos, como pollos, lémures y monos. Esto implica que la capacidad de la microbiota intestinal humana para reducir la bilirrubina está influenciada en gran medida por la abundancia de bacterias reductoras de bilirrubina asociadas a Firmicutes.
El cladograma de la siguiente Figura muestra las relaciones entre los diferentes taxones con genes de bilirrubina reductasa detectados. Los anillos exteriores muestran la presencia del gen BilR corto (rojo) y del gen BilR largo (naranja).
La bilirrubina reductasa suele estar ausente en el intestino neonatal
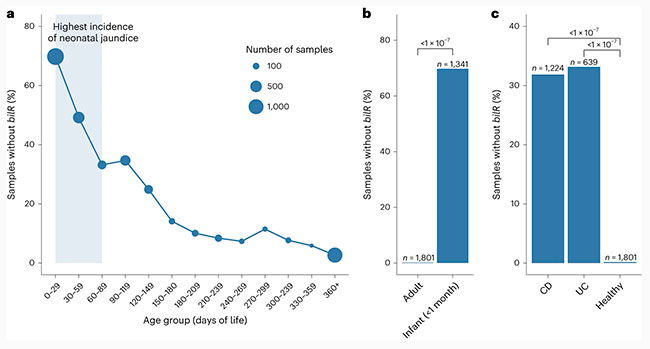
Para examinar la relación entre la bilirrubina reductasa, la edad y la salud, realizaron un análisis a gran escala de metagenomas intestinales humanos, en donde analizaron la presencia y ausencia de bilirrubina reductasa en 4296 metagenomas intestinales de lactantes durante el primer año de vida.
Tras ello, observaron una marcada tendencia: la bilirrubina reductasa solía estar ausente en los lactantes durante los primeros meses, cuando el riesgo de ictericia neonatal es mayor, pero estaba presente principalmente al final del primer año de vida.
Si bien es probable que diversos factores influyan en los niveles séricos de bilirrubina en los lactantes, la correspondencia entre el período de vida en el que se observa la mayor cantidad de muestras sin bilirrubina reductasa y el riesgo de ictericia neonatal, sugiere una fuerte conexión entre la composición del microbioma y el desarrollo de ictericia en lactantes.
La reducción de bilirrubina es una función esencial del intestino humano
Los niveles séricos de bilirrubina se alteran significativamente en pacientes con EII, lo que sugiere que el microbioma metabolizador de bilirrubina se ve afectado en esta enfermedad.
Al examinar metagenomas de adultos sanos, observaron que la bilirrubina reductasa estaba ausente en solo el 0,1% de las 1801 muestras analizadas, una proporción significativamente menor que la observada en lactantes (Figura 6b).
En comparación con los adultos sanos, se ha observado que los pacientes con EII presentan niveles más bajos de urobilina y desarrollan cálculos biliares pigmentados con altos niveles de bilirrubina. Asimismo, la bilirrubina reductasa estuvo ausente en una fracción significativamente mayor de muestras de pacientes con enfermedad de Crohn o colitis ulcerosa, en comparación con muestras de individuos sanos (Figura 6c). Esto proporciona evidencia de que las alteraciones taxonómicas microbianas asociadas con la EII y otras enfermedades inflamatorias pueden tener un impacto directo en la actividad de reducción de bilirrubina del microbioma intestinal.
Discusión y Conclusión
A pesar de que la urobilina fue identificada como el pigmento amarillo de la orina hace más de 125 años, la enzima responsable de su producción ha permanecido desconocida. Si bien se creía que varias enzimas participaban en la reducción de la bilirrubina, estos resultados respaldan la conclusión de que una sola enzima realiza la reducción de la bilirrubina a urobilinógeno.
La identificación de la bilirrubina reductasa permitió analizar su abundancia en 7960 metagenomas, demostrando que la reducción de la bilirrubina es una característica fundamental del microbioma humano adulto sano y que los neonatos suelen carecer de bilirrubina reductasa durante el período de mayor incidencia de ictericia neonatal. Además, la prevalencia de la bilirrubina reductasa disminuye en pacientes con enfermedad inflamatoria intestinal (EII).
Los experimentos de este estudio han demostrado que la bilirrubina reductasa puede realizar la reducción completa de la bilirrubina a urobilinógeno y tiene el potencial de actuar sobre múltiples sustratos, lo que sitúa a esta enzima en un papel central en la homeostasis de la bilirrubina.
La importancia de este proceso se ve aún más acentuada por la capacidad limitada de la enzima UGT1A1 en el hígado para conjugar la bilirrubina sérica, un paso limitante en la degradación del hemo. Además, se cree que la bilirrubina conjugada se desconjuga fácilmente por los microorganismos intestinales, y se ha demostrado que la actividad de estos sobre la bilirrubina conjugada es limitada, lo que sugiere que la reducción de la bilirrubina es el paso clave que determina el grado de reabsorción o excreción de los subproductos de la degradación del hemo.
Si bien el descubrimiento de la bilirrubina reductasa aclara una laguna importante en nuestra comprensión de los pasos relevantes para la salud en la excreción del hemo, existen otros aspectos de la vía metabólica que requieren mayor investigación. En primer lugar, si bien es probable que la bilirrubina se desconjugue mediante beta-glucuronidasas antes de ser reducida por BilR, se necesitan experimentos adicionales con diglucurónido de bilirrubina para confirmar el orden de la vía metabólica. En segundo lugar, existe un paso adicional en la vía posterior a la reducción de la bilirrubina, llevado a cabo por la microbiota intestinal, cuya enzima aún se desconoce: la reducción del urobilinógeno a estercobilinógeno. Al igual que la bilirrubina, el urobilinógeno podría actuar como aceptor terminal de electrones para los microorganismos que codifican estas reductasas, lo que les confiere una ventaja competitiva en el entorno anaeróbico del intestino.
Conociendo las especies, los genes y las enzimas implicadas en la reducción de la bilirrubina, la investigación futura puede centrarse en cómo el metabolismo microbiano intestinal de la bilirrubina afecta a la homeostasis de la bilirrubina sérica y en el papel de la reducción de la bilirrubina en la salud y la enfermedad.
El hallazgo en este trabajo de que la bilirrubina reductasa suele estar ausente en lactantes pequeños apoya la hipótesis de que la ictericia neonatal se ve exacerbada por la ausencia o la baja abundancia de microorganismos reductores de bilirrubina en el intestino.
Sin duda, múltiples factores relacionados tanto con el hospedador como con el microbioma contribuyen al desarrollo de la ictericia. Para abordar estos factores, se necesitarán nuevos estudios de cohortes que midan simultáneamente la bilirrubina sérica, los urobilinoides fecales y la abundancia absoluta de bacterias reductoras de bilirrubina en lactantes para dilucidar sus funciones en esta enfermedad.
Además de la ictericia neonatal, la reducción de bilirrubina por microorganismos intestinales es importante para la salud general porque se ha observado que las concentraciones de bilirrubina sérica se correlacionan inversamente con la adiposidad y la enfermedad cardiovascular. Las concentraciones de urobilina también tienen un impacto en la salud humana, estando correlacionadas positivamente con la resistencia a la insulina y la insuficiencia cardíaca. Esto subraya aún más la complejidad e importancia de la vía de degradación del hemo, confirmando el papel fundamental que desempeña la bilirrubina reductasa en la determinación del equilibrio de múltiples metabolitos relevantes para la salud.
Asimismo, las diferencias observadas entre los metagenomas de individuos sanos y los de pacientes con EII resaltan la posible alteración del metabolismo de la bilirrubina en la EII. La menor prevalencia de bacterias reductoras de bilirrubina en pacientes con EII lleva a plantear la hipótesis de que la alteración del metabolismo de la bilirrubina, combinada con el aumento previamente establecido de ácidos biliares primarios no conjugados en pacientes con EII, podría contribuir a la mayor incidencia de cálculos biliares de bilirrubinato de calcio observada en estos pacientes. Si bien estos resultados sugieren un papel para los microorganismos metabolizadores de bilirrubina en estas enfermedades, se necesita más investigación antes de poder llegar a conclusiones definitivas.
Así pues, este trabajo llena una laguna de conocimiento de larga data, proporcionando conocimientos fundamentales que servirán de base para futuras investigaciones sobre la importancia del metabolismo de la bilirrubina en la salud humana.
Fuente de este artículo
Este artículo fue publicado originalmente en la revista Nature Microbiology, bajo la referencia: Hall, B., Levy, S., Dufault-Thompson, K. et al. BilR is a gut microbial enzyme that reduces bilirubin to urobilinogen. Nat Microbiol 9, 173–184 (2024). https://doi.org/10.1038/s41564-023-01549-x; estando disponible con acceso libre en la propia web de Nature Microbiology.